

400-820-8531
 图1. 研究背景质谱的血清质组学介绍(图源:Shuken, J Proteome Res, 2023)
一、简洁
以质谱为本质的蛋清质组学是就可以克服针对蛋清质的一类型毛病,如蛋清质的编码序列、表达方式丰度、亚神经元确定、蛋清功能键、3d结构的、化学物质症状性及蛋清质-蛋清质主动影响等。某项新技术的本质器材也是质谱仪,它是就可以检测工具不一样很复杂成度的备样中蛋清质的水平自由电荷比(m/z)和数据信号屈服强度。 探究背景质谱的血清质组学常用见的技木其中之一是利用数值依赖性式收采(data-dependent acquisition,DDA)对样本(细胞膜、团队、体液以及绿植、真菌孢子等板材)开始非靶点自下而上(bottom-up)的酶联免疫法血清质组学实验设计。词组“自下而上”意思会从肽介绍中测算血清质的的信息,这形式探究的措施会从样本中离出来血清质,酶解为肽段,最后呢运用质谱介绍多肽(通常情况下7-30个核苷酸极其最佳)(图2)。当以DDA模式,得质谱数值时,在线检测到肽,最后呢会挨个的选择开始情节化,并能在中游数值介绍中配其回文序列。与删改的血清质好于,多肽有下面这几个优势:较小的大小不一细化匀称、更好反相有效率高效液相色谱(HPLC)隔离,并生产更非常容易解悉的情节光谱图。
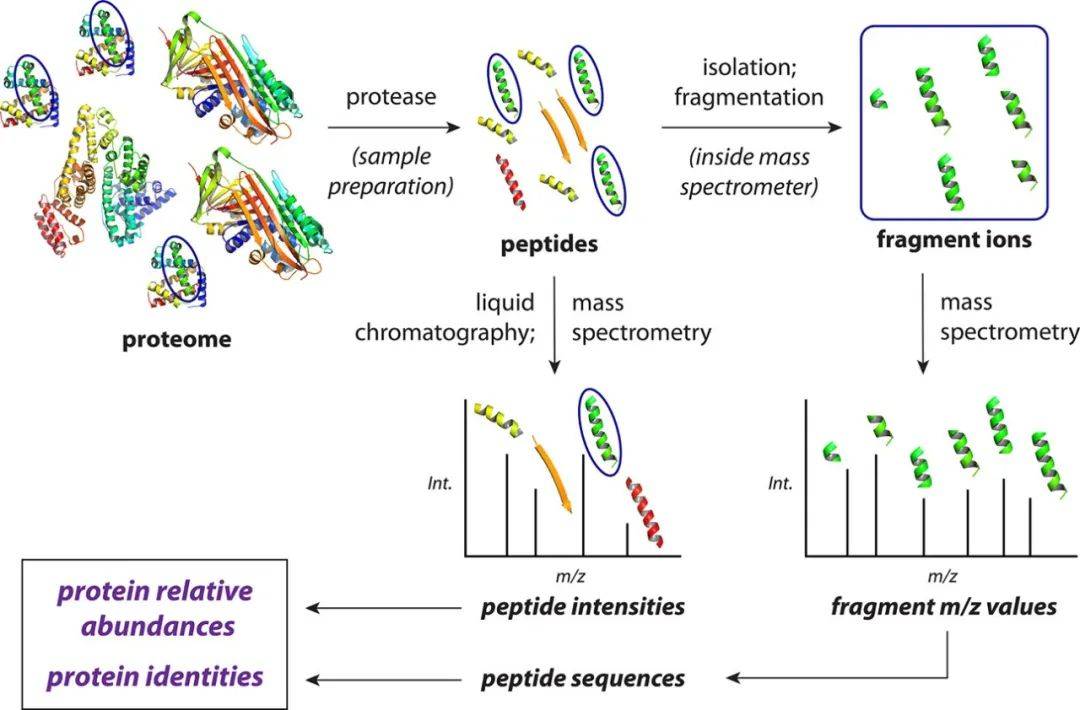 图2. 关键的非靶向治疗自下而上质谱球膳食纤维组实践的创新市场概念现状分析(图源:Shuken, J Proteome Res, 202
二、工作流程步骤
2.1 模板备制
每次营养物质质组检测都从仿品准备開始,自下而上营养物质质组学的通用的仿品准备工做流程图如同3一样。所有工作比如营养物质质的提炼、转化、用二硫苏糖醇(DTT)或磷酸三氯乙基酯(TCEP)复原二硫键、用碘乙酰胺(IAA)将巯基烷基化,并且 那么被LysC和胰营养物质酶“助肠蠕动”。助肠蠕动后的肽段需经C18包被的固相使用脱盐,后面将肽重悬于色谱仪色谱-关联质谱(LC-MS/MS)探讨兼容的水缓解液中,于此肽能能使用LC-MS/MS探讨(图3)。
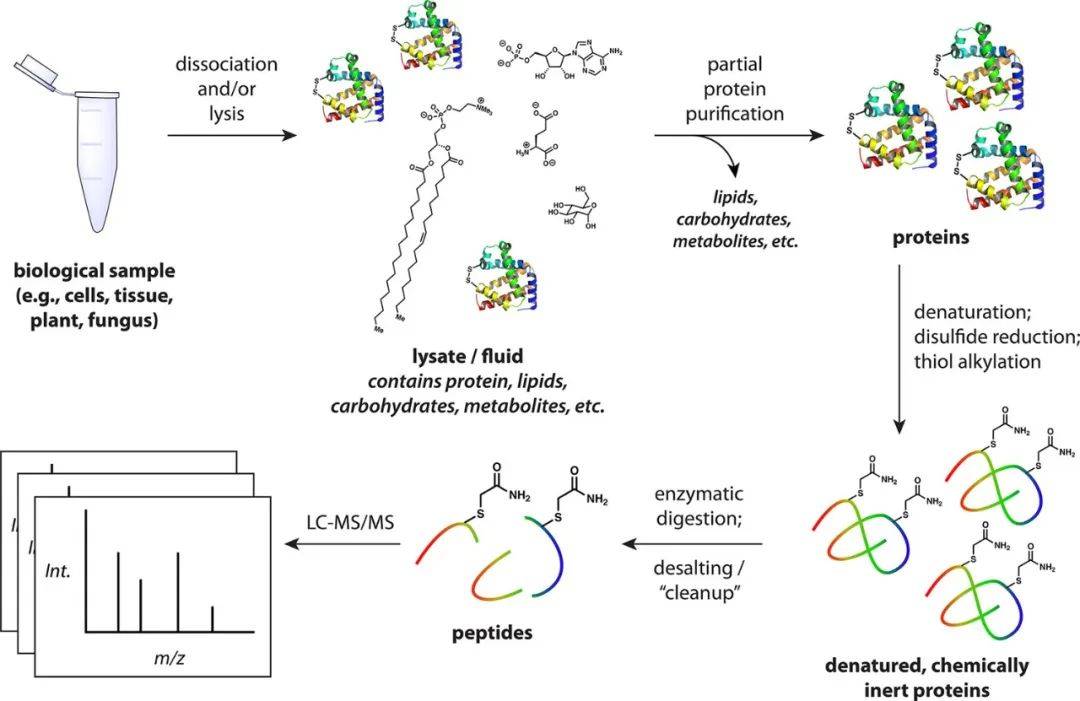 图 3. 特征提取自下而上质谱的核脂肪酸组学的代用供试品化学合成操作程序(图源:Shuken, J Proteome Res, 20
2.2 LC-MS/MS阐述
LC-MS/MS正常运作慢慢后的第一名步是样板英文截取和上样到HPLC柱上。跟据探讨一下仪器的有差异,这种的过程可能以多个有差异的方案的突发;图4分享一堆个简便的范本。在选用更高效能色谱仪色谱的非靶向治疗血清质组学的方法中,一般 包含可以通过释放-压(拉)第三释放+压(推)将当前占比的样板英文访问到更高效能色谱仪铁离子交换柱上。当肽被装运到铁离子交换柱上,还会也的突发四件事:色谱仪色谱、气质联用肽铁离子的行成(电离)、肽的质谱探讨一下(MS1)和场面描写的质谱探讨一下(MS2)。
 图4. LC-MS/MS中效率高色谱仪色谱法的还简化就说明(图源:Shuken, J Proteome Res, 2023)
2.2.1 HPLC
合格品借助操作预程序语言水饱和水水溶液等度的效率益效率高效液相高效液相正离子交换柱过柱,即在另一作业阶段中修改水饱和水水溶液混杂法物的组成成分,其大小经常为30-1八十分钟。在蛋白酶质组学中,效率益效率高效液相色谱近乎往往以反相机制做出,这象征着柱中补充了疏水固定好相(经常是二防氧化硅包被大小为19个碳的平滑烃链,统称C18)。水饱和水水溶液(流失相)经常是两种类型水饱和水水溶液的混杂法物(水水饱和水水溶液如0.1%甲酸和有机的水饱和水水溶液如乙腈),每张水饱和水水溶液都由属于自己的等度泵混凝土泵送。肽按照其其疏水溶性被要素脱离,在等度阶段中在各个时候(永久保存时候,RTs)过柱。更优等度决定于几块情况,主要包括高效液相正离子交换柱、合格品更复杂的特征、检测仪器和实验性计划。图5屏幕上显示好几个个操作HPLC等度做出肽脱离的典例,色谱下图的每一位峰代表人两组各个的正离子。
 图5. LC-MS/MS使用的典型性色谱图,印刷品为胰球蛋白酶酶和LysC化解的小鼠脑球蛋白酶(图源:Shuken, J Prote
2.2.2 肽电离
发生变化梯度方向的开始,大部分离心分离出来的肽被重复地噴射到光谱仪图图仪中。在施用电阻的损害下,从HPLC柱上方噴射出有效多肽的感应起电液滴;感应起电势的肽被脱溶(到气相色谱仪),到光谱仪图图仪,并在光谱仪图图仪内的电滋场引领下向前看加快推进(图6)。给定的肽在电离时往往能够 按照有差异于的电势模式;每隔电势模式往往相应的于质子化模式(有高低质子与肽根据)。有差异于的电势模式产生有差异于的m/z值:这类,z = 1的电离肽将有着m/z = [m + H],里面m是一般的中性肽的安全性能,H是质子的安全性能,而z = 2的一样的肽将有着m/z = [m + 2H]/2。肽的有差异于电势模式被非特异聊天离心分离出来,通称肽的有差异于“前体”。
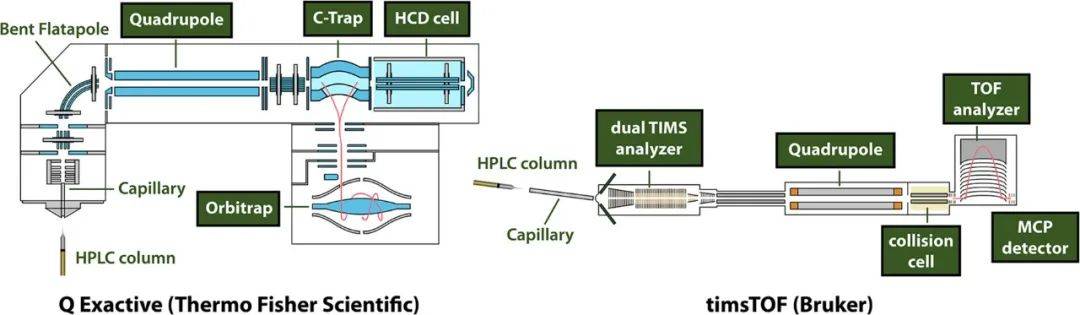 图6. 四种时尚的淀粉酶质组学质谱仪示图图(图源:Shuken, J Proteome Res, 2023)
2.2.3 肽质谱复印(MS1)
光谱仪分折仪重复高效抓取光谱仪分折以侦测电离肽。他们频谱数据采集活动被叫作“MS1扫锚”。某些质谱的抓取都需求一种的服务产品品质分折仪,它会按照他们的的服务产品品质正电荷比(m/z)值来详解亚铁离子,并且 一种估测联通宽带号的侦测器。多个留行的的服务产品品质分折仪和侦测器是飞机时段分折仪和道路阱(图7)。 Q Exactive(Thermo Fisher Scientific)是较为简便的钢轨、交通阱质谱仪,MS1扫描机的区间在400 ~ 1600 Th中间(Th为m/z的机构)。多肽流入C -Trap中,在吸纳动量的氮(N2)原子核的作用下,经由需要的铁亚铁正离子积累作文时长(“吸取时长”),C -Trap一起并立陆续其铁亚铁正离子送进钢轨、交通阱。若果流入钢轨、交通阱,铁亚铁正离子贯穿中心局轴进动,后以与植物的根的的m/z值成比例表的帧率沿轴自由振荡。当植物的根的电信时,会制造动荡直流电,采用傅里叶改换解决算出m/z值和构造。种的质量进行分析步骤具备高m/z区分率和高精准度。测定达成后,转换右图7A一样的MS1频谱。
 图7. MS1和MS2光谱分析的典例。A. MS1频谱;B. MS2频谱(图源:Shuken, J Proteome Res
2.2.4 魂晶MS复印机扫描(MS2)
MS1搜集检测的方法电离肽的m/z值和程度,但缺乏性肯定肽的身份/字段需要备考的的的信息。只不过m/z值普通都具有很高的精准的性,但在m/z粗差能接受范畴内会有非常多机会的肽,始终无法仅按照m/z来区分肽。要为换取鉴定费需要备考的的的信息,将多肽细节描写化(普通在肽键处),用质谱仪检测的方法细节描写,所述光谱图图叫做“MS2光谱图图”。 在只要MS1扫面后,光谱仪图分析仪在运作时将会会选取在MS1光谱仪图分析中观察分析到的一系阴阳离子做出重拾掌握和勾玉化。虽说产生多前体选取战略,但通畅选取光谱仪图分析中刚度是最高的的前体。为了能够以免抄袭选取事先勾玉化的肽,较近勾玉化的m/z值被检测在选取后。 是为了制定质谱峰可否也许 是指肽而非是严重污染破坏无机化合物,光谱仪仪收集周围的重拉曼光谱峰,如13C和15N。某个碳全都12C的无机化合物的品质(m)比含有某个13C的相当无机化合物的品质(m)低1.003 Da,含13C无机化合物各自的MS峰的m/z值差不多高1/z,如z = 1时高1.0 Th, z = 2时高0.5 Th,z = 3时高0.33 Th,依或者推。所以,给定任意观测到的峰,若果在此类m/z距離上显示周围的峰,则不错推定无机化合物的带电粒子。此类峰的取决于挠度也不错估测出无机化合物含有多少钱C和N原子结构,所以无机化合物是肽的也许 性有多么大(图8);在给定的m/z下,肽的典型案例拉曼光谱峰挠度比区别于洗洁剂或碳水无机化合物等多种碳原子。根据多数非肽严重污染破坏无机化合物含有+1带电粒子,还有就是z = +1的肽精彩片段一般内容较少,一般选泽带+2或更重带电粒子的无机化合物参与碎裂。
 图8. 模仿质量水平加强阳正离子的MS1谱(图源:Shuken, J Proteome Res, 2023)
 图9. 系统设计手机移动质子建模方法的碰撞检测成脂解离(CID)残破的事件的也许 考核机制(图源:Shuken, J Proteome Res,
2.2.5 总结ppt
正个均值方向全工作中(大多数为30 - 1八十分钟),光谱仪仪仪的劲积累作文作文液相阳亚铁离子。MS1阳亚铁离子获评估为肽样性能实行了解,不同假定的肽被自己积累作文作文和英雄大数据统计表格库时代(MS2),之后无限循环导杆。在Q Exactive中,若以此MS1扫一扫耗费50 ms,并启用10次MS2扫一扫,一次扫一扫耗费200 ms,那么的这些时间间隔将在约有2 s内顺利完成。在timsTOF中,的典例的时间间隔都要25 ~ 200 ms。这些时间间隔在正个均值方向全工作中从复上百到数万次,行成数万个光谱仪仪。那样采摘格局被统称数据统计表格库依赖感采摘(DDA),因此抓取MS2频谱的衡量于衡量于MS1数据统计表格库;另一个种策略是数据统计表格库单独采摘(DIA)。如上上述,不做好电离的肽不懂被加测到,但肽也应该较好地英雄大数据统计表格库时代,即行成足够了有新信息的英雄泥石以供分辨(图9)。三、拜谱怪物个人总结
这一期內容相信价绍了研究背景质谱的淀粉酶酶质实验室步骤流程的样例提供及LC-MS/MS定性分析一下,下两篇将价绍数据统计定性分析一下及淀粉酶酶质组学最前沿提升,拔冗美景!分类文献资料:
Shuken SR. An Introduction to Mass Spectrometry-Based Proteomics. J Proteome Res. 2023; 22(7):2151-2171. doi: 10.1021/acs.jproteome.2c00838.


 关注度公众平台号


 瞩目点点书


